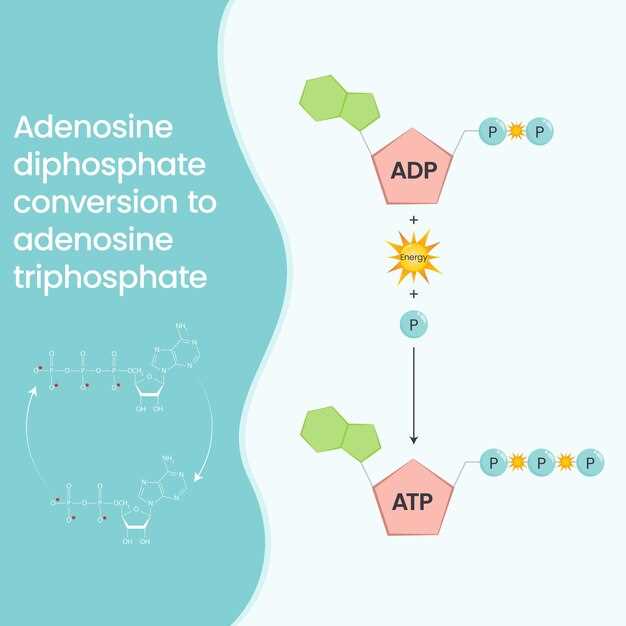
В ходе каждого полного цикла гликолиза одна молекула глюкозы производит две молекулы пирувата, реагируя с рядом ферментов и соединений. При этом изначальная молекула АТФ расходуется, чтобы активировать глюкозу, затем часть энергии восстанавливается за счет синтеза новых молекул АТФ. В результате за один цикл остаются две молекулы АТФ чистой прибыли, а также образуются две молекулы НАДH, которые участвуют в более поздних этапах энергетического обмена.
Отсюда следует, что при полном гликолизе одна молекула глюкозы дает около 2 молекул чистого ATP. Такой показатель подчеркивает, насколько важно понимание последовательности реакций, чтобы оценить эффективность этого быстрого энергетического механизма, и как он встроен в более сложные процессы жизнедеятельности организма.
Механизм производства ATP в гликолизе: расчет и особенности
При гликолизе на каждую молекулу глюкозы образуется 2 молекулы ATP за счет прямой фосфорилировки субстратов. Процесс начинается с этапа гликации, где глюкоза превращается в двойной фосфат глицеральдегид-3-фосфата. Эта реакция требует затрат 2 ATP, которые активируют исходное вещество.
Далее, в цепочке реакций, каждая молекула глицеральдегид-3-фосфата окисляется с одновременной фосфорилировкой, что приводит к образованию 2 молекул 3-фосфоглицерата. В процессе этого преобразуются 2 NADH, которые позже смогут участвовать в цепи переноса электронов для получения дополнительной энергии.
На следующем этапе происходит ферментативная фосфорилировка, в результате которой из 2 молекул 1,3-бисфосфоглицерата выделяется 2 молекулы АТФ. Этот процесс называется субстратно-фосфорилированием и обеспечивает прямой синтез АТФ за счет энергетического потенциала промежуточных соединений.
Общая сумма производства АТФ равна 4 молекулам, однако с учетом затрат 2 ATP на начальных этапах, итоговый чистый прирост составляет 2 молекулы. Это является одним из наиболее быстрых способов получения энергии в клетке, особенно в условиях отсутствия кислорода.
Особенность этого механизма – возможность быстрого синтеза ATP при высокой интенсивности метаболизма, а также неизбежная потеря части энергии в виде тепла и тепловых потерь в цепи переноса электронов. Правильный расчет позволяет понять, как клетка балансирует затратами и прибылью энергии в короткие сроки и при разных физиологических условиях.
Общая схема реакции гликолиза: этапы и промежуточные соединения
Начинаем с глюкозы, которая карбонизируется и превращается в глюкозо-6-фосфат с помощью фермента гексокиназы. Этот этап активирует молекулу для дальнейшей обработки, затрачивая одну молекулу АТФ.
Далее глюкозо-6-фосфат превращается в фруктозо-6-фосфат под действием изомеразы. Затем происходит фосфорилирование с образованием фруктозо-1,6-бисфосфата при участии фосфофруктокиназы, которая использует еще одну молекулу АТФ.
Фруктозо-1,6-бисфосфат разлагается на две триозы: глицеральдегид-3-фосфат и диофосфоглицеральную кислоту, с помощью фермента Aldolase. Оба продукта быстро превращаются в глицеральдегид-3-фосфат, образуя цикл и сохраняя количество активных центров реакции.
Глицеральдегид-3-фосфат окисляется и фосфорилируется под действием глицеральдегид-3-фосфатдегидрогеназы, образуя 1,3-бисфосоглицерат. В процессе происходит перенос электронов на НАД+ и образование НАДH.
Следующая реакция – превращение 1,3-бисфосглицерата в 3-фосфоглицерат с образованием ATP за счет субстратного фосфорилирования. Точная реакция – это фосфорилазация 3-фосфоглицерата при помощи фермента фосфоглицераткиназы.
Далее 3-фосфоглицерат превращается в 2-фосфоглицерат под действием фосфоглицератмутазы, после чего происходит дегидратация с образованием фосфоенолпирувата (ФЕП), точка высокого энергетического потенциала.
Образованный фосфоенолпируват, в своем активном состоянии, служит донором фосфатной группы, превращая пируват в фосфоенолпируват под действием пируваткиназы и генерируя еще один ATP.
Пируват, завершение гликолиза, может дальше использоваться в аэробных или анаэробных условиях, однако финальной целью было получение АТФ и обмен веществ.
Физика и химия превращений: как ATP синтезируется из глюкозы
При гликолизе глюкоза расщепляется с помощью последовательности ферментативных реакций, в ходе которых происходит перенос электронов и фосфатных групп. Основной механизм включает окисление глюкозы до двух молекул пирувата, при этом формируются несколько промежуточных соединений, таких как фруктозо-1,6-бисфосфат и глицеральдегид-3-фосфат.
Каждая из этих стадий сопровождается редокс-реакциями, где электроны передаются к переносчикам NAD+ и FAD, превращая их в NADH и FADH2. Эти переносчики аккумулируют энергию, которая затем используется для синтеза ATP в дальнейшем. Конечный результат – образование 4 молекул ATP за счет субстратного фосфорилирования, однако из них только 2 считаются чистым доходом для клетки, так как 2 ATP используются в начальных этапах.
Фосфатные группы присоединяются к молекуле глюкозы при помощи особых ферментов, таких как гексокиназа и фосфофруктокиназа, обеспечивая подготовку молекул для последующих окислительных реакций. Важной частью этого процесса является создание условий для переноса фосфатных групп на АТФ, что достигается за счет энергии, высвобождаемой на каждом этапе распада глюкозы.
Ключевым элементом является превращение энергии химических связей в энергию, запасенную в макромолекуле АТФ. Это происходит благодаря реакции фосфорилирования, в которой Фосфатные группы присоединяются к ADP, образуя ATP. В процессе задействованы ферменты и коферменты, обеспечивающие быструю и эффективную загрузку энергии без потерь.
Общая численность молекул ATP, образуемых за один цикл гликолиза из одной молекулы глюкозы, достигает 4, однако итоговая чистая продукция равна 2 ATP, так как 2 ATP затрачиваются на стартовые реакции. Этот показатель показывает эффективность и энергоемкость гликолиза, который служит первым этапом получения энергии в клетке.
Количество ATP: теоретический расчет и реальные показатели
Каждое молекула глюкозы теоретически дает 2 молекулы ATP в ходе гликолиза. При этом, за счет субстратного фосфорилирования образуются 4 молекулы ATP, из которых 2 используются для собственных затрат, что приводит к чистому приросту 2 ATP. Однако в живых клетках действительно образуется около 2–3 ATP с одной молекулы глюкозы за счет потерь энергии на последующих этапах метаболического путя и различных физиологических факторов.
Реальные показатели могут варьировать в зависимости от условий, типа клетки и скорости обмена веществ. В ткани, активной в энергетических задачах, таких как мышцы, количество реально образуемых ATP может достигать 2,2–2,5 молекул на молекулу глюкозы. В то же время, в спокойных условиях организм зачастую не вырабатывает максимальную возможную отдачу энергии из глюкозы, что обуславливает чуть более низкий показатель.
Фактический выход ATP также зависит от эффективности транспорта NADH из цитоплазмы в митохондрию, где он участвует в окислительном фосфорилировании. Эффективность этого процесса существенным образом влияет на итоговое количество ATP, образуемого из одной молекулы глюкозы.
Таким образом, хотя теоретический расчет подтверждает образование 2 ATP за гликолиз, в реальных условиях показатель часто превышает 2 за счет последующих этапов энергетического метаболизма. Важно учитывать эти различия при анализе энергетической эффективности клеток или организации биохимических экспериментов.
Ключевые ферменты и их роль в образовании ATP
Фермент гексокиназа ускоряет фосфорилирование глюкозы, что служит началом процесса получения АТФ в гликолизе. Он обеспечивает первую энергоактивирующую реакцию, позволяя клетке использовать глюкозу как источник энергии.
Фермент фосфофрактокиназа-1 (ФФК-1) играет центральную роль, регулируя скорость гликолиза. Он обеспечивает ключевой контроль, реагировать на уровни АТФ и фосфоенолпирувата для балансировки процесса, что позволяет клетки адаптироваться к изменяющимся энергетическим потребностям.
Гліцеральдегід-3-фосфатдегідрогеназа (ГГД) катализирует превращение глицеральдегид-3-фосфата в 1,3-бифосфоглицерат, сопровождающееся образованием НАДН. Этот фермент способствует прямому участию в производстве энергии за счет NADH, что позже может быть использовано для генерации ATP.
Фосфоглицеролвы фосфатсинтетаза стимулирует образование 3-фосфоглицерата из 1,3-бифосфоглицерата, позволяя получить АТФ путем субстратного?ного фосфорилирования на уровне субстрата. Это один из механизмов, обеспечивающих синтез АТФ без участия митохондрий.
Фермент пируваткиназа завершает гликолиз, катализируя преобразование фосфоенолпирувата в пируват с образованием молекул АТФ. Это место ключевое, так как здесь синтез АТФ достигает своего пика, обеспечивая клетке энергию для дальнейших процессов.
Практические аспекты и вариации в образовании ATP при гликолизе
Количество ATP, образующегося при гликолизе, зависит от вида клеток и условий метаболизма. В мышечных тканях в условиях интенсивной нагрузки гликолиз может ускоряться, повышая образование ATP за счет усиленного ферментативного цикла.
Образование ATP при гликолизе варьируется в зависимости от концентрации глюкозы, уровня кислорода и активности ферментов. Например, у бактерий и дрожжей могут наблюдаться дополнительные пути, дающие возможность синтезировать больше энергии за счет анаэробных процессов.
На практике, для оценки эффективности гликолиза в различных условиях используют показатели активности ферментов, таких как гексокиназа и фосфофруктозоиназа. Повышенная активность этих ферментов часто коррелирует с увеличением продукции ATP.
Рассмотрим типовые вариации:
| Параметр | Возможные вариации | Влияние на ATP |
|---|---|---|
| Концентрация глюкозы | Высокая / низкая | Высокая глюкоза – больше производства ATP, низкая – снижение |
| Кислородный режим | Аэробный / анаэробный | При наличии кислорода образуется больше ATP, при его отсутствии – меньше, за счет перехода к другим метаболическим путям |
| Активность ферментов | Повышенная / пониженная | Повышенная активность усиливает производство ATP, пониженная – ограничивает |
| Температура клетки | Оптимальная / повышенная | Оптимальная – поддержание баланса и эффективности, повышенная – риск деградации ферментов и снижения продукции ATP |
Практическое использование этих данных позволяет регламентировать условия лабораторных экспериментов или оптимизировать терапевтические подходы, например, в лечении метаболических нарушений или при создании биотехнологических процессов.
Влияние условий клетки на синтез ATP в гликолизе
Оптимизация условий клетки прямо влияет на эффективность производства ATP в ходе гликолиза. Высокий уровень глюкозы стимулирует активность ферментов гликолиза, такие как гексокиназа и фосфофрuktокиназа, что увеличивает скорость образования ATP. При этом наличие достаточного уровня кислорода или его дефицит меняет баланс между анаэробным и аэробным гликолизом, что отражается на конечной сумме синтезируемого ATP.
Ключевое значение имеет pH клетки. Нейтральная или слегка щелочная среда способствует оптимальной активности ферментов гликолиза, тогда как кислое или слишком щелочное состояние замедляет процесс, снижая выход ATP. Также важна температура: закономерно, что при повышении температуры активность ферментов возрастает, однако превышение допустимых границ вызывает их деградацию и снижение продуктивности.
Ингибиторы и активаторы внутри клетки дополнительно регулируют производство ATP. Высокий уровень цитозольных ионных концентраций, например, ионов кальция или ионов водорода, может как стимулировать, так и тормозить ключевые ферменты гликолиза. К примеру, избыток ионов кальция активирует фосфофрuktокиназу, ускоряя синтез ATP.
Значение имеет и доступность NAD+ – кофермента, необходимого для гликолиза. В условиях ограниченного кислорода, NADH переходит в лактат, освободив NAD+ для продолжения гликолиза. Такой механизм обеспечивает стабильное производство ATP даже при низком кислороде, хотя и не столь эффективное, как аэробный гликолиз.
Таким образом, на продуктивность ATP существенно влияют совокупность метаболических условий, таких как уровень глюкозы, pH, наличие кислорода и активность регуляторных ионов. Контроль за ними позволяет клеткам адаптировать энергообеспечение под текущие потребности и условия окружающей среды.
Различия между аэробным и анаэробным гликолизом
В аэробном гликолизе клетка использует кислород для полного окисления глюкозы, что позволяет синтезировать до 36-38 молекул ATP из одной молекулы глюкозы. Этот процесс включает последовательное превращение глюкозы в пируват, который затем поступает в митохондрии, где происходит его окончательное окисление. В результате этого цикла образуются вода и углекислый газ, а энергия аккумулируется в молекулах ATP и NADH.
Анаэробный гликолиз происходит при недостатке кислорода и ограничивается образованием лишь 2 молекул ATP на каждую глюкозу. В этом случае пируват превращается в лактат или другие конечные продукты без участия митохондрий. Такой процесс быстрее, но энергия выделяется намного менее эффективно, что делает его характерным для кратковременных и интенсивных физических нагрузок, например, спринтов или тяжелой работы мышц.
Ключевое отличие заключается в конечных продуктах и затрате энергии. Аэробный гликолиз обеспечивает более высокий выход ATP за счет полного окисления веществ, тогда как анаэробный ограничен минимальными затратами, но обеспечивает быстрый источник энергии. В зависимости от условий и потребностей организма, выбирается один из этих путей метаболизма.
Рассмотрение неполных и альтернативных путей производства ATP
Некоторые клетки используют неполные пути расщепления глюкозы, такие как гликолиз без последующего окисления через циклы Тиффа и окислительного фосфорилирования. В таких случаях образуется меньше ATP, зачастую всего 2 молекулы на молекулу глюкозы, что достаточно для поддержания базовых функций клетки, но не для интенсивных процессов. В основном такие варианты встречаются в анаэробных условиях или в нервных тканях, где важна скорость, а не максимальный выход энергии.
Альтернативные пути включают использование различных мономеров, например, глицерола или кетоновых тел, которые могут вступать в обменные реакции, образуя промежуточные соединения, идущие на аэробные метаболические пути. В этом случае образование ATP происходит по цепи переноса электронов, минуя стандартные этапы гликолиза, иногда в сочетании с ферментативными модуляциями, позволяющими повысить или снизить продуктивность.
Некоторые микроорганизмы и анаэробные организмы используют альтернативные ферменты и цепи, такие как ферментативный путь фермента фумараза в физиологических условиях, где энергия высвобождается более экономично или более быстро, без полного окисления глюкозы. Это позволяет им выживать в условиях ограниченного кислорода или при необходимости быстрого получения энергии.
В ряде случаев клетки прибегают к медиаторам, например, гипоксантиновому пути, активируя специальные ферменты, которые позволяют обходить традиционные этапы генерации ATP, хотя и с меньшей отдачей энергии. Подобные механизмы помогают стабилизировать энергетический обмен при стрессовых условиях и позволяют адаптировать производство энергии к текущим потребностям организма.
Применение знаний о ATP гликолиза в биотехнологии и медицине
Использование механизма образования ATP при гликолизе позволяет расширить возможности производства биотоплива и биоматериалов. Например, разработка ферментативных систем для увеличения выхода ATP способствует повышению эффективности биосинтеза необходимых веществ на промышленном уровне.
В медицине знание о регулировке уровня ATP в клетках помогает создавать лекарственные препараты, направленные на восстановление энергетического баланса у пациентов с нарушениями обмена веществ или клеточной деградации. Точные модели гликолиза позволяют предсказывать реакции и влиять на метаболические пути с помощью фармакологических средств.
Благодаря пониманию механизма получения ATP, ученые разрабатывают методы для диагностики туморных процессов, поскольку раковые клетки зачастую используют гликолиз активнее обычных. Анализы уровня метаболитов гликолиза помогают выявлять онкологические заболевания на ранних стадиях и контролировать эффективность лечения.
Инновационные подходы в биотехнологии используют гликолитические пути для создания новых видов ферментов и биороботов, способных управлять энергетическими затратами клеток и повышать их устойчивость. Например, внедрение генов, активирующих гликолитические реакции, помогает выращивать биологические системы с повышенной выживучестью при стрессовых условиях.
Область терапий при метаболических нарушениях активно использует ингибиторы ключевых ферментов гликолиза, тем самым регулируя производство ATP и снижая патологическую активность клеток. Создание таких препаратов требует глубокого понимания молекулярных аспектов процесса, чтобы снизить побочные эффекты и повысить точность воздействия.
Разработки в области генной инженерии используют знания о гликолизе для создания клеточных моделей, максимально приближенных к физиологическим условиям, что ускоряет тестирование новых медикаментов и методов терапии. Детальный анализ ATP-пути помогает понять, как клетка использует ресурсы и какие механизмы обеспечивают ее жизнеспособность при различных стрессах.