Начинайте изучение скелетной мышцы с понимания того, что её основная единица – это средоточие сократительной активности – мышечная клетка, или мироцит. Именно? обеспечивает способность мышцы генерировать силу и двигать тела.
Каждая мышечная клетка состоит из множества сочного набора миофибрилл, которые по сути и выполняют функцию сокращения. Эти миофибриллы состоят из тонких и толстых нитей – актиновых и миозиновых волокон, – что и делает возможной подготовку к движению.
Понимание работы этих нитей важно для представления, как мышца реагирует на нервные сигналы. Скорость и сила сокращения определяются именно взаимодействием этих структур, что становится возможным благодаря сложной системе регуляции внутри клетки, включающей ионы калия и кальция.
Ключевые компоненты миофибрилл и их роль в мышечном сокращении
Три важнейших компонента включают цепочки актина, ремень миозинов и регуляторные белки, такие как тропомиозин и кальциевый тропонин. Тропомиозин блокирует активные сайты на актине, предотвращая случайное сокращение. Под действием кальция тропониоз смещает тропомиозин, открывая доступ к активным сайтам и позволяя миозиновым головкам связывать актин. Этот процесс запускает цикл скольжения, в ходе которого миозиновые головки захватывают актиновую нитку, тянут её к центру и освобождают, что приводит к сокращению мышцы.
Наряду с этим, структура саркомера, основная единица миофибриллы, обеспечивает упорядоченное расположение этих компонентов, что позволяет мышечной ткани быстро и эффективно сокращаться. Механизм работы основан на цикле скольжения, который повторяется многократно, создавая силу, необходимую для движения. Контурные изменения длины миофибрилл и миоцитов при сокращении достигаются за счет точной координации работы всех этих компонентов, что повышает эффективность сокращений даже при малых усилиях.
Структура и строение миофибрилл: основные элементы и их расположение
Ключевыми элементами внутри саркомера являются миофиламенты двух типов: толстые и тонкие. Тонкие миофиламенты состоят преимущественно из актиновых нитей, которые располагаются по бокам саркомера, образуя сплошной слой. Толстые миофиламенты, состоящие из миозиновых нитей, расположены посередине и перемежаются с актиновыми. Их взаимодействие – основа процесса сокращения мышечной ткани.
Важную роль выполняют белковые комплексы, такие как тропонин и тропомиозин, расположенные на актиновых нитях. Они регулируют связывание миозина с актином и отвечают за управление сокращением. В центре саркомера вдоль оси находятся структура Z, которая соединяет соседние миофибриллы и поддерживает их расположение. Непосредственно внутри миофибрилл, между миофиламентами, расположены белковые структуры, такие как титин и nebulin, поддерживающие форму и устойчивость нитей.
Все эти элементы расположены в строгой последовательности и сопровождаются тонко регулируемыми связями, которые обеспечивают синхронное сокращение. Взаимодействие актиновых и миозиновых нитей происходит по определенной цепочке, из-за чего миофибриллы способны генерировать силу и обеспечивать движение мышечной ткани.
Миозиновые и актиновый нитевидные образования: как они взаимодействуют
Образуя основную структуру мышечного сокращения, миозин и актин взаимодействуют через хорошо организованный механизм, который начинается с формирования театров и их перемещения. На поверхности актиновых нитей расположены активные участки, к которым прикрепляется головка миозина, обеспечивая скольжение нитей относительно друг друга.
Процесс запускается под действием кальция, который высвобождается из саркоплазматического ретикулума. При повышении концентрации кальция связывается с тропонином – белком, находящимся на актиновой нити, что вызывает изменение положения тропомиозина, освобождая сайты связывания миозина.
Когда-sites активны, головка миозина, прикрепившись к актиновому сегменту, пытается совершить ‘устремление’, используя энергию, высвобождаемую при гидролизе АТФ. Этот ‘устремление’ ведет к сближению миозиновой головки с телом миозина и смещению вдоль актина на небольшое расстояние.
Такое циклическое взаимодействие повторяется, скольжение нитей внутри саркомера продолжается, что и вызывает сокращение мышцы. Когда уровень кальция снижается, головки миозина отпадают от актиновых сайтов, и мышца расслабляется. Процесс повторяется при новом возбуждении.
Важно, чтобы всё это происходило синхронно, что достигается точной регуляцией концентрации кальция и активностью связанных белков. В результате актина и миозина создают цепь взаимодействий, которая преобразует химическую энергию в механическую работу.
Связующие белки: стабилизация и регулирование синаптической передачи
Используйте белки-клейки, такие как ?-актинин и молекулы связи, для укрепления структуры синаптического аппарата. Они создают надежные мостики между пресинаптической мембраной и актиновым каркасом, гарантируя стабилизацию расположения транспортных белков и рецепторов.
Обратите особое внимание на роль белков-сетаиновых белков, которые регулируют организацию синаптических vesicles. Их активное взаимодействие с другими компонентами обеспечивает точность высвобождения нейромедиаторов и предотвращает их ненужное рассеивание.
Для регулировки активности синаптических белков используйте модификации, такие как фосфорилирование. Это повышает или понижает их аффинитет к другим белкам, что позволяет динамично управлять процессами передачи сигнала в зависимости от условий клеточной среды.
Совместное функционирование стабилизирующих и регулирующих белков помогает сохранять баланс в синаптической передаче, что важно для нормальной работы мышечной ткани. Удержание правильной конфигурации белковых комплексов снижает риск нарушения передачи, связанного с патологическими состояниями.
Механизм скользящих нитей: процесс преобразования электрического сигнала в движение
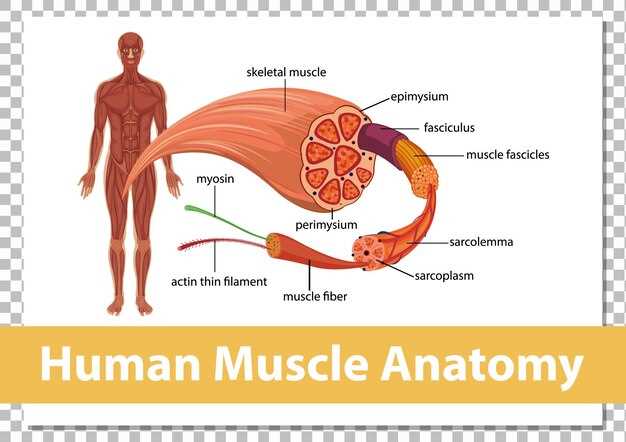
Начинайте с возникновения электромиографического потенциала в мотонейроне, который активирует синапс на мышечной клетке. Передача сигнала происходит через ацетилхолин, вызывая деполяризацию постсинаптической мембраны. Эта деполяризация распространяется по Т-трубкам, пронизывающим мышечное волокно, достигая мышечных Т-тиканей и стимулируя высвобождение ионов кальция из саркоплазматического ретикулума.
Высвобождение кальция ведет к связыванию ионов с тропонином, что вызывает смещение тропомиозинов и обнажает активные участки актинов. В этот момент миозиновый головки соединяются с актиновыми треками, образуя кросс-мосты. Энергия гидролиза АТФ обеспечивает вращение миозиновых головок, вызывая скольжение актинов относительно миозинов. Этот взаимный сдвиг сокращает sarcomeres – основные структурные элементы мышечного волокна.
Постепенно прекращение сигнала вызывает вытеснение кальция и его возврат в саркоплазматический ретикулум. Образовавшиеся кросс-мосты распадаются, мышечное волокно расслабляется. Регулярное повторение этого механизма обеспечивает последовательное сокращение и расслабление мышцы, превращая электрические импульсы в механическую работу, и создавая силу и движение.
Механики работы структурно-функциональной единицы: от сигналов до движений
Передача мышечного импульса начинается с возбуждения мотонейрона, которое вызывает высвобождение ацетилхолина в синаптическую щель. Этот нейромедиатор связывается с рецепторами на мембране сарколеммы, запускает цепь событий, приводящих к открытию ионных каналов и деполяризации клеточной поверхности.
Деполяризация распространяется по сарколемме и проникает в мышечную клетку через Т-трубки, обеспечивая быстрое распространение сигнала по всей толщине волокна. В этот момент активируется система саркоплазматического ретикулума, высвобождающего ионы кальция (Ca2+), которые связываются с тропонином.
| Этап | Детали |
|---|---|
| Связывание кальция | Ионы Ca2+ освобождаются из саркоплазматического ретикулума и связываются с тропонином, что вызывает изменение его конформации. |
| Обнажение активных участков | Из-за изменения тропонина микрофиламенты актина открывают доступ к активным участкам, на которых закреплены головки миозина. |
| Фазовое скольжение | Головки миозина закрепляются за активные участки актина, используют энергию АТФ для фиксации и скольжения вдоль актиновых нитей, сокращая мышечное волокно. |
| Разрыв связей и цикл | После использования энергии, головки миозина отрываются от актина, возвращаются в исходную позицию за счет гидролиза АТФ и повторяют цикл при наличии Ca2+. |
| Закрепление состояния | По мере уменьшения концентрации Ca2+ в саркоплазме, ионы покидают тропонин, активные участки закрываются, и мышечное волокно расслабляется. |
Ключевая роль в этом механизме принадлежит ионной системе: постоянное поступление сигналов и их интерпретация управляют степенью сокращения мышц. Понимание этой цепочки помогает точней регулировать усилие и скорость движений, а также реагировать на различные ситуации нагрузки и усталости.
Передача сигнала внутри мышечной клетки: роль саркоплазматического ретикулума и ионных каналов
Начинайте с активации мотонейрэна, который вызывает выпуск ацетилхолина в синаптическую щель. Ацетилхолин связывается с рецепторами на постсинаптической мембране мышечной клетки, что вызывает открытие натриевых каналов и возбуждение мембраны. Это возбуждение быстро распространяется по сарколемме, создавая потенциал действия.
После формирования потенциала действия, сигнал достигает Т-трубочек – специализированных систем, пронизывающих мышечную клетку. Т-трубочки служат быстродейственным проводником, который передает сигнал вглубь клетки, непосредственно взаимодействуя с саркоплазматическим ретикулумом.
Соединение Т-трубочек с саркоплазматическим ретикулумом – ключ к управлению высвобождением кальция. Когда потенциал действия попадает в Т-трубочки, он вызывает изменение конформации рианодиновых рецепторов – ионных каналов на саркоплазматическом ретикулуме. Это изменение открывает каналы, позволяя кальцию выйти в цитоплазму.
Высвобождение кальция из саркоплазматического ретикулума мотивирует сокращение мышечных волокон. Кальциевые ионные каналы на саркоплазматическом ретикулуме быстро закрываются после достижения пика, что способствует прекращению высвобождения кальция. Молчание каналов вызывает повторное захоронение кальция в ретикулуме, что позволяет мышце расслабиться.
Активность ионных каналов регулируется не только потенциалом действия, но и внутренними сигналами клетки. Правильная балансировка открывания и закрывания каналов обеспечивает своевременное и координированное сокращение мышечной ткани.
Таким образом, саркоплазматический ретикулум и ионные каналы формируют критическую цепочку внутри мышечной клетки, объединяющую возбуждение с сокращением. Эта система гарантирует быстрое реагирование и точную управление мышечными движениями.
Роль кальция в управлении мышечным сокращением
Обеспечьте быстрый и точный ответ мышечной ткани на нервный сигнал за счет регулирования уровня свободного кальция в цитоплазме. При поступлении потенциала действия в миофибриллы кальциевые ионовые каналы активируются, что вызывает высвобождение кальция из саркоплазматического ретикулума. Этот процесс обеспечивает быстрый скачок концентрации кальция в цитоплазме, который необходим для инициирования слияния актиновых и миозиновых филаментов и запуска сокращения.
Поддерживайте концентрацию кальция на оптимальном уровне, чтобы обеспечить полное взаимодействие активных участков филаментов. После завершения сокращения кальций связывается с тропомиозином, что восстанавливает его характерное положение и блокирует взаимодействие актин и миозин. Это позволяет мышечной ткани расслабляться и подготовиться к следующему сокращению.
Регулярная стимуляция мышечных волокон и сбалансированное питание, богатое кальцием, помогают поддерживать здоровье и эффективность мышечной системы. В результате, правильное управление уровнем кальция способствует высокой срочности ответа мышц, их силе и выносливости.
Электромиографическая активность и её отражение в работе миофибрилл
Для оценки активности мышечных волокон используйте электромиографию (ЭМГ). Эта методика позволяет регистрировать электрические сигналы, возникающие при возбуждении мышечных волокон. Чем выше интенсивность возбуждения, тем сильнее электромиографический сигнал.
ЭМГ показывает, как миофибриллы реагируют на нервные импульсы. В спокойном состоянии активность минимальна, без значительных электросигналов. При активной работе мышцы наблюдается увеличение частоты и амплитуды электромиографических волн, что свидетельствует о возбуждении все большего числа миофибрилл.
Миофибриллы функционируют через последовательное взаимодействие актиновых и миозиновый нитей в саркомерах, что обеспечивает сокращение мышечных волокон. Электромиографическая активность отражает совокупность этих процессов: чем интенсивнее сокращение, тем более выраженные сигналы на ЭМГ.
Изменения в электромиографическом сигнале помогают понять, как распределяется нагрузка между различными типами мышечных волокон. Например, при низкой интенсивности работы активируются медленные, устойчивые к усталости волокна, а при высокой – быстро сокращающиеся, быстрые волокна. Это проявляется в виде увеличения частоты электросигналов и большей их амплитуды.
Динамический контроль электромиографической активности позволяет выявить особенности сокращения и усталости миофибрилл. Постоянный мониторинг помогает определить оптимальный режим тренировки или выявить признаки перерастяжения или перенапряжения мышечных структур.
В целом, электромиография служит инструментом для непосредственного наблюдения за работой миофибрилл в реальном времени, раскрывая механизмы возбуждения и взаимодействия мышечных волокон при различных уровнях нагрузки.
Преморфологические изменения при утомлении мышц и их причины
Накапливание метаболических продуктов, таких как лактат и ионы кальция, вызывает нарушение мембранных структур, что приводит к расширению саркопlasматических и митохондриальных сосудов. В результате происходит повреждение саркоплазматического ретикулума, вызывающее снижение его возможности регуляции ионов и обмена веществ.
Мышечные волокна демонстрируют признаки гипертрофии среди первичных структур, таких как миофибриллы, из-за временного увеличения синтеза белка, однако при длительном утомлении наблюдается их разрушение и смена на менее функциональные типы волокон.
Разрушение цитоскелетных элементов приводит к деструкции мышечных клеток, вызывает отек и повышенную проницаемость мембран. Эти изменения сопровождаются увеличением числа воспалительных клеток в межмышечной ткани, что способствует дальнейшим повреждениям и ухудшению сокращательной функции.
Причинами данных изменеий выступают накапливание продуктов обмена веществ, дефицит энергетических запасов, а также механическая нагрузка, превышающая возможности мышечных волокон. Всё это способствует быстрому развитию патофизиологических процессов и ухудшению структурной целостности мышечной ткани.